Chương 36: Cơ chế của thị giác
Richard P. Feynman — The Feynman Lectures on Physics, Tập I, Chương 36: “Mechanisms of Seeing”
36–1 Cảm giác màu
Khi thảo luận về giác quan thị giác, chúng ta phải nhận thức rằng (ngoài một phòng trưng bày nghệ thuật hiện đại ra!) người ta không nhìn thấy những đốm màu ngẫu nhiên hay những đốm sáng ngẫu nhiên. Khi chúng ta nhìn vào một vật, chúng ta nhìn thấy một người hay một vật; nói cách khác, bộ não diễn giải những gì chúng ta nhìn thấy. Nó làm điều đó bằng cách nào, không ai biết, và dĩ nhiên nó làm điều đó ở một mức rất cao. Mặc dù rõ ràng chúng ta thật sự học cách nhận ra một người trông như thế nào sau rất nhiều kinh nghiệm, có một số đặc điểm của thị giác sơ đẳng hơn nhưng cũng liên quan đến việc kết hợp thông tin từ các phần khác nhau của những gì chúng ta nhìn thấy. Để giúp chúng ta hiểu cách chúng ta diễn giải một ảnh toàn thể, việc nghiên cứu các giai đoạn sớm nhất của việc tập hợp thông tin từ các tế bào võng mạc khác nhau là đáng làm. Trong chương này, chúng ta sẽ tập trung chủ yếu vào khía cạnh đó của thị giác, mặc dù chúng ta cũng sẽ đề cập một số vấn đề phụ trong quá trình đi tới.
Một ví dụ về sự kiện rằng chúng ta có một sự tích lũy, ở một mức rất sơ đẳng, thông tin từ vài phần của mắt cùng một lúc, vượt ngoài sự kiểm soát tự nguyện hay khả năng học hỏi của chúng ta, là cái bóng màu lam đó, được tạo ra bởi ánh sáng trắng khi cả ánh sáng trắng và ánh sáng đỏ đều đang chiếu lên cùng một màn. Hiệu ứng này ít nhất liên quan đến tri thức rằng nền của màn là màu hồng, mặc dù, khi chúng ta đang nhìn vào cái bóng màu lam, chỉ có ánh sáng “trắng” đi vào một điểm cụ thể trong mắt; ở đâu đó, các mẩu thông tin đã được tập hợp lại với nhau. Bối cảnh càng đầy đủ và quen thuộc, mắt càng sẽ thực hiện nhiều hiệu chỉnh đối với những điều kỳ lạ. Thật vậy, Land đã chỉ ra rằng nếu chúng ta trộn màu lam biểu kiến đó và màu đỏ theo các tỉ lệ khác nhau, bằng cách dùng hai bản trong suốt chụp ảnh có sự hấp thụ đặt trước màu đỏ và màu trắng theo các tỉ lệ khác nhau, nó có thể được làm cho biểu diễn một cảnh thật, với các vật thật, khá trung thực. Trong trường hợp này chúng ta cũng thu được rất nhiều màu biểu kiến trung gian, tương tự như những gì chúng ta sẽ thu được bằng cách trộn đỏ và lam–lục; nó dường như là một tập hợp màu gần như đầy đủ, nhưng nếu chúng ta nhìn chúng thật kỹ, chúng không tốt lắm. Dù vậy, thật đáng ngạc nhiên là có thể thu được nhiều đến thế chỉ từ đỏ và trắng. Cảnh càng trông giống một tình huống thật, người ta càng có khả năng bù trừ cho sự kiện rằng mọi ánh sáng thật ra chẳng là gì ngoài màu hồng!
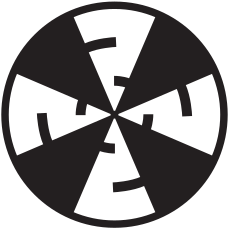
Một ví dụ khác là sự xuất hiện của “màu sắc” trong một đĩa quay đen–trắng, mà các vùng đen và trắng của nó như được cho trong Hình 36–1. Khi đĩa được quay, sự biến thiên của sáng và tối tại bất kỳ một bán kính nào cũng đúng như nhau; chỉ có nền là khác nhau đối với hai loại “sọc”. Vậy mà một trong các “vòng” xuất hiện có màu với một màu này và vòng còn lại với một màu khác.1 Chưa ai hiểu lý do của những màu đó, nhưng rõ ràng thông tin đang được tập hợp lại ở một mức rất sơ đẳng, rất có thể là trong chính con mắt.
Hầu như mọi lý thuyết ngày nay về thị giác màu đều đồng ý rằng dữ liệu trộn màu chỉ ra rằng chỉ có ba sắc tố trong các tế bào nón của mắt, và rằng sự hấp thụ phổ trong ba sắc tố đó về cơ bản tạo ra cảm giác màu. Nhưng cảm giác tổng thể gắn liền với các đặc trưng hấp thụ của ba sắc tố tác động cùng nhau không nhất thiết là tổng của các cảm giác riêng lẻ. Tất cả chúng ta đều đồng ý rằng màu vàng đơn giản là không có vẻ là màu lục hơi đỏ; thật vậy có lẽ hầu hết mọi người sẽ vô cùng ngạc nhiên khi khám phá ra rằng ánh sáng, thật ra, là một hỗn hợp các màu, bởi vì có lẽ cảm giác ánh sáng là do một quá trình nào khác chứ không phải một sự pha trộn đơn giản như một hợp âm trong âm nhạc, nơi ba nốt nhạc có mặt cùng một lúc và nếu chúng ta lắng nghe kỹ chúng ta có thể nghe chúng riêng lẻ. Chúng ta không thể nhìn kỹ và nhìn thấy màu đỏ và màu lục.
Các lý thuyết sớm nhất về thị giác nói rằng có ba sắc tố và ba loại tế bào nón, mỗi loại chứa một sắc tố; rằng một dây thần kinh chạy từ mỗi tế bào nón tới bộ não, sao cho ba mẩu thông tin được mang tới bộ não; và rồi trong bộ não, bất cứ điều gì cũng có thể xảy ra. Dĩ nhiên, đây là một ý tưởng không đầy đủ: việc khám phá ra rằng thông tin được mang dọc theo dây thần kinh thị giác tới bộ não chẳng giúp ích gì, bởi vì chúng ta thậm chí còn chưa bắt đầu giải quyết bài toán. Chúng ta phải hỏi những câu hỏi cơ bản hơn: Việc thông tin được tập hợp ở đâu có tạo ra khác biệt gì không? Việc nó được mang thẳng lên bộ não trong dây thần kinh thị giác có quan trọng không, hay võng mạc có thể thực hiện một ít phân tích trước? Chúng ta đã nhìn thấy một hình ảnh của võng mạc như một thứ cực kỳ phức tạp với rất nhiều kết nối liên thông (Hình 35–2) và nó có thể thực hiện một số phân tích.
Thật vậy, những người nghiên cứu giải phẫu và sự phát triển của mắt đã chỉ ra rằng võng mạc, thật ra, là bộ não: trong sự phát triển của phôi, một mảnh của bộ não đi ra phía trước, và các sợi dài mọc ngược trở lại, nối các mắt với bộ não. Võng mạc được tổ chức đúng theo cách bộ não được tổ chức và, như ai đó đã diễn đạt thật đẹp, “Bộ não đã phát triển một cách để nhìn ra thế giới bên ngoài.” Mắt là một mảnh của bộ não đang chạm vào ánh sáng, có thể nói như vậy, ở phía ngoài. Vậy không hề khó có khả năng rằng một ít phân tích về màu đã được thực hiện rồi trong võng mạc.
Điều này cho chúng ta một cơ hội rất thú vị. Không giác quan nào khác liên quan đến một lượng tính toán lớn như vậy, có thể nói như vậy, trước khi tín hiệu đi vào một dây thần kinh mà người ta có thể thực hiện các phép đo trên đó. Các tính toán cho mọi giác quan còn lại thường xảy ra trong chính bộ não, nơi rất khó tiếp cận các chỗ cụ thể để thực hiện phép đo, bởi vì có rất nhiều kết nối liên thông. Ở đây, với giác quan thị giác, chúng ta có ánh sáng, ba lớp tế bào thực hiện các tính toán, và các kết quả của các tính toán được truyền qua dây thần kinh thị giác. Vậy chúng ta có cơ hội đầu tiên để quan sát về mặt sinh lý cách, có lẽ, các lớp đầu tiên của bộ não hoạt động trong các bước đầu tiên của chúng. Do đó nó có mối quan tâm gấp đôi, không chỉ thú vị đối với thị giác, mà còn thú vị đối với toàn bộ bài toán sinh lý học.
Sự kiện rằng có ba sắc tố không có nghĩa là nhất thiết phải có ba loại cảm giác. Một trong các lý thuyết khác về thị giác màu cho rằng thật ra có các sơ đồ màu đối nghịch (Hình 36–2). Tức là, một trong các sợi thần kinh mang rất nhiều xung nếu có màu vàng đang được nhìn thấy, và ít hơn bình thường đối với màu lam. Một sợi thần kinh khác mang thông tin lục và đỏ theo cùng cách đó, và một sợi khác nữa, trắng và đen. Nói cách khác, trong lý thuyết này ai đó đã bắt đầu đưa ra một phỏng đoán về hệ thống nối dây, phương pháp tính toán.
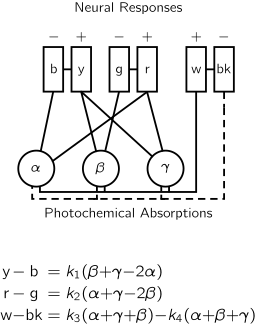
Các bài toán chúng ta đang cố giải quyết bằng cách phỏng đoán về các tính toán đầu tiên này là các câu hỏi về các màu biểu kiến được nhìn thấy trên một nền hồng, điều gì xảy ra khi mắt thích nghi với các màu khác nhau, và cả các hiện tượng gọi là tâm lý. Các hiện tượng tâm lý có bản chất, chẳng hạn, là màu trắng không “cảm thấy” giống như đỏ và vàng và lam, và lý thuyết này được đưa ra bởi vì các nhà tâm lý học nói rằng có bốn màu thuần túy biểu kiến: “Có bốn kích thích có khả năng đáng chú ý trong việc gợi ra các sắc thái lam, vàng, lục, và đỏ đơn giản về mặt tâm lý tương ứng. Không giống như màu đất sienna, màu đỏ tươi (magenta), màu tía, hay hầu hết các màu có thể phân biệt được, các sắc thái đơn giản này không bị pha trộn theo nghĩa không sắc thái nào tham dự vào bản chất của sắc thái khác; cụ thể, màu lam không hơi vàng, hơi đỏ, hay hơi lục, và cứ thế; đây là các sắc thái sơ cấp về mặt tâm lý.” Đó là một sự kiện tâm lý, có thể nói như vậy. Để tìm ra sự kiện tâm lý này đã được suy ra từ bằng chứng nào, chúng ta phải lục tìm rất kỹ trong toàn bộ tài liệu: Trong tài liệu hiện đại tất cả những gì chúng ta tìm thấy về chủ đề này là các lần lặp lại của cùng một phát biểu, hay của một phát biểu bởi một nhà tâm lý học người Đức, người dùng một trong các thẩm quyền của ông là Leonardo da Vinci, người mà, dĩ nhiên, tất cả chúng ta đều biết là một nghệ sĩ vĩ đại. Ông nói, “Leonardo nghĩ có năm màu.” Rồi, nhìn xa hơn nữa, chúng ta tìm thấy, trong một cuốn sách còn cổ hơn, bằng chứng cho chủ đề này. Cuốn sách nói điều gì đó như thế này: “Màu tía là màu lam hơi đỏ, màu cam là màu vàng hơi đỏ, nhưng màu đỏ có thể được nhìn thấy như màu cam hơi tía không? Màu đỏ và màu vàng chẳng phải đơn nhất hơn màu tía hay màu cam sao? Người bình thường, được yêu cầu phát biểu những màu nào là đơn nhất, nêu tên đỏ, vàng, và lam, ba màu này, và một số người quan sát thêm một màu thứ tư, màu lục. Các nhà tâm lý học quen chấp nhận bốn màu là các sắc thái nổi bật.” Vậy đó là tình huống trong phân tích tâm lý về vấn đề này: nếu mọi người nói có ba, và ai đó nói có bốn, và họ muốn nó là bốn, thì nó sẽ là bốn. Điều đó cho thấy khó khăn với các nghiên cứu tâm lý. Rõ ràng chúng ta có những cảm giác như vậy, nhưng rất khó thu được nhiều thông tin về chúng.
Vậy hướng khác để đi là hướng sinh lý, tìm ra bằng thực nghiệm điều gì thật sự xảy ra trong bộ não, mắt, võng mạc, hay bất cứ nơi nào, và có lẽ khám phá ra rằng một số tổ hợp xung từ các tế bào khác nhau di chuyển dọc theo các sợi thần kinh nhất định. Nhân tiện, các sắc tố sơ cấp không nhất thiết phải ở trong các tế bào riêng biệt; người ta có thể có các tế bào trong đó có hỗn hợp của các sắc tố khác nhau, các tế bào với sắc tố đỏ và lục, các tế bào với cả ba (thông tin của cả ba khi đó là thông tin trắng), và cứ thế. Có nhiều cách để nối hệ thống lại, và chúng ta phải tìm ra cách tự nhiên đã dùng. Hy vọng rằng, cuối cùng, khi chúng ta hiểu các kết nối sinh lý chúng ta sẽ có một ít hiểu biết về một số khía cạnh đó của tâm lý học, vậy chúng ta nhìn theo hướng đó.
36–2 Sinh lý của mắt
Chúng ta bắt đầu bằng cách nói không chỉ về thị giác màu, mà về thị giác nói chung, chỉ để nhắc lại cho mình về các kết nối liên thông trong võng mạc, được cho trong Hình 35–2. Võng mạc thật ra giống như bề mặt của bộ não. Mặc dù hình ảnh thật qua kính hiển vi trông phức tạp hơn một chút so với bản vẽ hơi sơ lược này, bằng phân tích cẩn thận người ta có thể nhìn thấy mọi kết nối liên thông này. Không có nghi ngờ gì rằng một phần của bề mặt võng mạc được nối với các phần khác, và rằng thông tin đi ra trên các sợi trục dài, thứ tạo thành dây thần kinh thị giác, là các tổ hợp thông tin từ nhiều tế bào. Có ba lớp tế bào trong chuỗi chức năng: có các tế bào võng mạc, là những tế bào mà ánh sáng tác động lên, một tế bào trung gian lấy thông tin từ một hay vài tế bào võng mạc và đưa nó ra lại cho vài tế bào trong một lớp tế bào thứ ba và mang nó tới bộ não. Có đủ loại kết nối chéo giữa các tế bào trong các lớp.
Bây giờ chúng ta chuyển sang một số khía cạnh của cấu trúc và hoạt động của mắt (xem Hình 35–1). Việc hội tụ ánh sáng được thực hiện chủ yếu bởi giác mạc, bởi sự kiện rằng nó có một bề mặt cong “bẻ cong” ánh sáng. Đây là lý do chúng ta không thể nhìn rõ dưới nước, bởi vì khi đó chúng ta không có đủ sự khác biệt giữa chiết suất của giác mạc, là 1,37, và của nước, là 1,33. Phía sau giác mạc là nước, thực tế là như vậy, với chiết suất 1,33, và phía sau đó là một thấu kính có cấu trúc rất thú vị: nó là một dãy các lớp, như một củ hành, ngoại trừ việc nó hoàn toàn trong suốt, và nó có chiết suất 1,40 ở giữa và 1,38 ở phía ngoài. (Sẽ rất hay nếu chúng ta có thể chế tạo kính quang học trong đó chúng ta có thể điều chỉnh chiết suất xuyên suốt, bởi vì khi đó chúng ta sẽ không phải uốn cong nó nhiều như khi chúng ta có một chiết suất đồng đều.) Hơn nữa, hình dạng của giác mạc không phải là hình dạng của một mặt cầu. Một thấu kính cầu có một lượng cầu sai nào đó. Giác mạc “phẳng hơn” ở phía ngoài so với một mặt cầu, đúng theo cách sao cho cầu sai đối với giác mạc ít hơn so với nếu chúng ta đặt một thấu kính cầu vào đó! Ánh sáng được hệ giác mạc–thấu kính hội tụ lên võng mạc. Khi chúng ta nhìn các vật ở gần hơn và xa hơn, thấu kính thắt chặt và nới lỏng và thay đổi tiêu điểm để điều chỉnh cho các khoảng cách khác nhau. Để điều chỉnh cho tổng lượng ánh sáng có mống mắt, là thứ chúng ta gọi là màu của mắt, nâu hay lam, tùy thuộc vào đó là ai; khi lượng ánh sáng tăng và giảm, mống mắt di chuyển vào và ra.
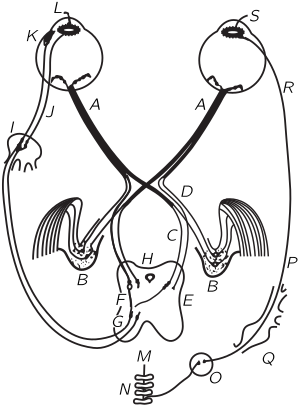
Bây giờ hãy nhìn vào bộ máy thần kinh để kiểm soát sự điều tiết của thấu kính, chuyển động của mắt, các cơ quay mắt trong hốc mắt, và mống mắt, được cho sơ lược trong Hình 36–3. Trong mọi thông tin đi ra khỏi dây thần kinh thị giác A, phần lớn được chia vào một trong hai bó (mà chúng ta sẽ nói về sau) và từ đó tới bộ não. Nhưng có một vài sợi, đáng quan tâm đối với chúng ta bây giờ, không chạy trực tiếp tới vỏ thị giác của bộ não nơi chúng ta “nhìn thấy” các ảnh, mà thay vào đó đi vào não giữa H. Đây là các sợi đo ánh sáng trung bình và thực hiện điều chỉnh cho mống mắt; hoặc, nếu ảnh trông mờ, chúng cố hiệu chỉnh thấu kính; hoặc, nếu có một ảnh đôi, chúng cố điều chỉnh mắt cho thị giác hai mắt. Dù sao đi nữa, chúng đi qua não giữa và phản hồi trở lại vào mắt. Tại K là các cơ vận hành sự điều tiết của thấu kính, và tại L một cơ khác chạy vào mống mắt. Mống mắt có hai hệ cơ. Một là một cơ vòng L mà, khi nó bị kích thích, kéo vào và đóng mống mắt xuống; nó tác động rất nhanh và các dây thần kinh được nối trực tiếp từ bộ não qua các sợi trục ngắn vào mống mắt. Các cơ đối ngược là các cơ hướng tâm, sao cho, khi mọi thứ trở nên tối và cơ vòng thư giãn, các cơ hướng tâm này kéo ra. Ở đây chúng ta có, như ở nhiều nơi trong cơ thể, một cặp cơ hoạt động theo các hướng đối ngược, và trong hầu như mọi trường hợp như vậy các hệ thần kinh kiểm soát cả hai được điều chỉnh rất tinh tế, sao cho khi tín hiệu được gửi vào để thắt chặt một cơ, tín hiệu tự động được gửi vào để nới lỏng cơ kia. Mống mắt là một ngoại lệ kỳ lạ: các dây thần kinh làm mống mắt co lại là những dây chúng ta vừa mô tả, nhưng các dây thần kinh làm mống mắt giãn ra đi ra từ không ai biết chính xác là từ đâu, đi xuống tủy sống phía sau ngực, vào các đoạn ngực, ra khỏi tủy sống, lên qua các hạch cổ, và vòng hết đường quay trở lại lên đầu để vận hành đầu kia của mống mắt. Thật vậy, tín hiệu đi qua một hệ thần kinh hoàn toàn khác, không phải hệ thần kinh trung ương chút nào, mà là hệ thần kinh giao cảm, vậy đó là một cách rất lạ để làm cho mọi thứ hoạt động.
Chúng ta đã nhấn mạnh một điều lạ khác về mắt, rằng các tế bào nhạy sáng ở phía sai, sao cho ánh sáng phải đi qua vài lớp tế bào khác trước khi nó đến được các thụ thể — nó được xây dựng lộn trong ra ngoài! Vậy một số đặc điểm thì tuyệt vời và một số thì dường như ngu ngốc.
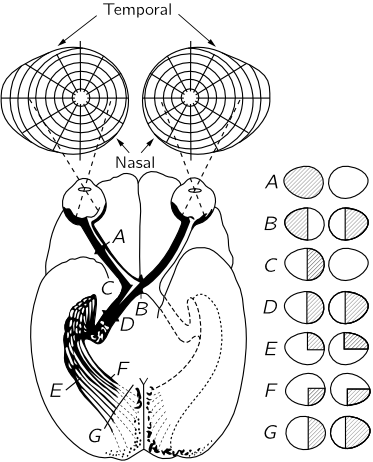
Hình 36–4 cho thấy các kết nối của mắt tới phần của bộ não liên quan trực tiếp nhất đến quá trình thị giác. Các sợi thần kinh thị giác chạy vào một vùng nào đó ngay phía sau D, gọi là thể gối ngoài (lateral geniculate), mà từ đó chúng chạy ra tới một phần của bộ não gọi là vỏ thị giác. Lưu ý rằng một số sợi từ mỗi mắt được gửi sang phía bên kia của bộ não, vậy hình ảnh được tạo thành là không đầy đủ. Các dây thần kinh thị giác từ phía trái của mắt phải chạy qua giao thoa thị giác (optic chiasma) B, trong khi các dây ở phía trái của mắt trái vòng quanh và đi theo cùng đường này. Vậy phía trái của bộ não nhận mọi thông tin đến từ phía trái của nhãn cầu của mỗi mắt, tức là, ở phía phải của trường nhìn, trong khi phía phải của bộ não nhìn thấy phía trái của trường nhìn. Đây là cách thông tin từ mỗi một trong hai mắt được tập hợp lại với nhau để cho biết các vật ở bao xa. Đây là hệ thống thị giác hai mắt.
Các kết nối giữa võng mạc và vỏ thị giác rất thú vị. Nếu một điểm trong võng mạc bị cắt bỏ hay phá hủy theo bất kỳ cách nào, thì toàn bộ sợi sẽ chết, và nhờ đó chúng ta có thể tìm ra nó được nối ở đâu. Hóa ra, về cơ bản, các kết nối là một–một — đối với mỗi điểm trong võng mạc có một điểm trong vỏ thị giác — và các điểm rất gần nhau trong võng mạc thì rất gần nhau trong vỏ thị giác. Vậy vỏ thị giác vẫn biểu diễn sự sắp xếp không gian của các tế bào que và nón, nhưng dĩ nhiên bị bóp méo rất nhiều. Các thứ ở trung tâm của trường, chiếm một phần rất nhỏ của võng mạc, được mở rộng trên rất nhiều, rất nhiều tế bào trong vỏ thị giác. Rõ ràng việc các thứ vốn ở gần nhau, vẫn ở gần nhau, là hữu ích. Tuy nhiên, khía cạnh đáng chú ý nhất của vấn đề là điều sau đây. Nơi người ta sẽ nghĩ việc các thứ ở gần nhau là quan trọng nhất sẽ là ngay ở giữa trường nhìn. Tin hay không, đường thẳng đứng–xuống trong trường nhìn của chúng ta khi chúng ta nhìn vào một thứ gì đó có bản chất sao cho thông tin từ mọi điểm ở phía phải của đường đó đang đi vào phía trái của bộ não, và thông tin từ các điểm ở phía trái đang đi vào phía phải của bộ não, và cách vùng này được tạo thành, có một vết cắt chạy thẳng xuống qua giữa, sao cho các thứ rất gần nhau ngay ở giữa lại ở rất xa nhau trong bộ não! Bằng cách nào đó, thông tin phải đi từ phía này của bộ não sang phía kia qua một số kênh khác, điều này khá đáng ngạc nhiên.
Câu hỏi làm thế nào mạng lưới này bao giờ được “nối dây” lại với nhau là rất thú vị. Bài toán bao nhiêu phần đã được nối dây sẵn và bao nhiêu phần được học là một bài toán cũ. Trước đây từ lâu người ta đã nghĩ rằng có lẽ nó hoàn toàn không phải được nối dây cẩn thận, nó chỉ được kết nối liên thông một cách thô, và rồi, bằng kinh nghiệm, đứa trẻ học được rằng khi một thứ “ở trên kia” nó tạo ra một cảm giác nào đó trong bộ não. (Các bác sĩ luôn nói cho chúng ta đứa trẻ “cảm thấy” gì, nhưng làm sao họ biết một đứa trẻ cảm thấy gì ở tuổi lên một?) Đứa trẻ, ở tuổi lên một, được cho là nhìn thấy một vật “ở trên kia”, nhận một cảm giác nào đó, và học cách với tay “tới kia”, bởi vì khi nó với tay “tới đây”, nó không hoạt động. Cách tiếp cận đó có lẽ không đúng, bởi vì chúng ta đã thấy rằng trong nhiều trường hợp có các kết nối liên thông chi tiết đặc biệt này. Sáng tỏ hơn là một số thí nghiệm đáng chú ý nhất được thực hiện với một con kỳ giông. (Nhân tiện, với kỳ giông có một kết nối bắt chéo trực tiếp, không có giao thoa thị giác, bởi vì các mắt ở mỗi phía của đầu và không có vùng chung. Kỳ giông không có thị giác hai mắt.) Thí nghiệm là như thế này. Chúng ta có thể cắt dây thần kinh thị giác ở một con kỳ giông và dây thần kinh sẽ mọc ra lại từ các mắt. Hàng nghìn hàng nghìn sợi tế bào như vậy sẽ tự tái lập lại. Bây giờ, trong dây thần kinh thị giác các sợi không ở kề nhau — nó giống như một cáp điện thoại lớn, làm cẩu thả, mọi sợi xoắn và quay, nhưng khi nó đến bộ não chúng đều được sắp xếp lại. Khi chúng ta cắt dây thần kinh thị giác của kỳ giông, câu hỏi thú vị là, nó có bao giờ được làm thẳng ra lại không? Đáp án thật đáng chú ý: có. Nếu chúng ta cắt dây thần kinh thị giác của kỳ giông và nó mọc trở lại, kỳ giông có thị lực tốt trở lại. Tuy nhiên, nếu chúng ta cắt dây thần kinh thị giác và lật mắt lộn ngược và để nó mọc trở lại, nó có thị lực tốt hẳn hoi, nhưng nó có một lỗi khủng khiếp: khi kỳ giông nhìn thấy một con ruồi “ở trên đây”, nó nhảy về phía nó “ở dưới kia”, và nó không bao giờ học được. Do đó có một cách bí ẩn nào đó mà nhờ đó hàng nghìn hàng nghìn sợi tìm được đúng chỗ của chúng trong bộ não.
Bài toán này, bao nhiêu phần được nối dây sẵn, và bao nhiêu phần không, là một bài toán quan trọng trong lý thuyết về sự phát triển của sinh vật. Đáp án chưa được biết, nhưng đang được nghiên cứu tích cực.
Cùng thí nghiệm trong trường hợp một con cá vàng cho thấy có một nút thắt khủng khiếp, như một vết sẹo lớn hay biến chứng, trong dây thần kinh thị giác nơi chúng ta cắt nó, nhưng bất chấp tất cả điều này các sợi vẫn mọc trở lại đúng chỗ của chúng trong bộ não.
Để làm điều này, khi chúng mọc vào các kênh cũ của dây thần kinh thị giác chúng phải thực hiện vài quyết định về hướng chúng nên mọc. Chúng làm điều này bằng cách nào? Dường như có các manh mối hóa học mà các sợi khác nhau đáp ứng khác nhau. Hãy nghĩ về số lượng khổng lồ các sợi đang mọc, mỗi sợi là một cá thể khác với các sợi lân cận của nó theo một cách nào đó; khi đáp ứng với bất cứ manh mối hóa học nào, nó đáp ứng theo một cách đủ duy nhất để tìm được đúng chỗ của nó cho kết nối cuối cùng trong bộ não! Đây là một điều thú vị — kỳ diệu. Nó là một trong các hiện tượng vĩ đại mới được khám phá của sinh học và chắc chắn có liên quan đến nhiều bài toán cũ chưa giải được về tăng trưởng, tổ chức, và phát triển của sinh vật, và đặc biệt là của phôi.
Một hiện tượng thú vị khác liên quan đến chuyển động của mắt. Các mắt phải được di chuyển để làm cho hai ảnh trùng nhau trong các hoàn cảnh khác nhau. Các chuyển động này thuộc các loại khác nhau: một loại là để đi theo một thứ gì đó, đòi hỏi cả hai mắt phải đi cùng một hướng, phải hay trái, và loại kia là để hướng chúng về cùng một chỗ ở các khoảng cách khác nhau, đòi hỏi chúng phải di chuyển ngược nhau. Các dây thần kinh đi vào các cơ của mắt đã được nối dây sẵn đúng cho các mục đích như vậy. Có một bộ dây thần kinh sẽ kéo các cơ ở phía trong của một mắt và phía ngoài của mắt kia, và thư giãn các cơ đối ngược, sao cho hai mắt di chuyển cùng nhau. Có một trung tâm khác nơi một sự kích thích sẽ khiến các mắt di chuyển vào phía nhau từ song song. Mỗi mắt có thể được quay ra góc nếu mắt kia di chuyển về phía mũi, nhưng không thể, một cách có ý thức hay vô thức, quay cả hai mắt ra ngoài cùng một lúc, không phải vì không có cơ, mà vì không có cách nào để gửi một tín hiệu để quay cả hai mắt ra ngoài, trừ khi chúng ta đã gặp tai nạn hay có điều gì đó không ổn, chẳng hạn nếu một dây thần kinh đã bị cắt. Mặc dù các cơ của một mắt chắc chắn có thể lái mắt đó đi xung quanh, ngay cả một Yogi (người luyện yoga) cũng không thể di chuyển cả hai mắt ra ngoài một cách tự do dưới sự kiểm soát tự nguyện, bởi vì dường như không có cách nào để làm điều đó. Chúng ta đã được nối dây sẵn đến một mức độ nhất định rồi. Đây là một điểm quan trọng, bởi vì hầu hết các sách sớm hơn về giải phẫu và tâm lý học, và cứ thế, không đánh giá đúng hay không nhấn mạnh sự kiện rằng chúng ta đã được nối dây sẵn hoàn toàn đến thế — chúng nói rằng mọi thứ chỉ được học.
36–3 Tế bào que
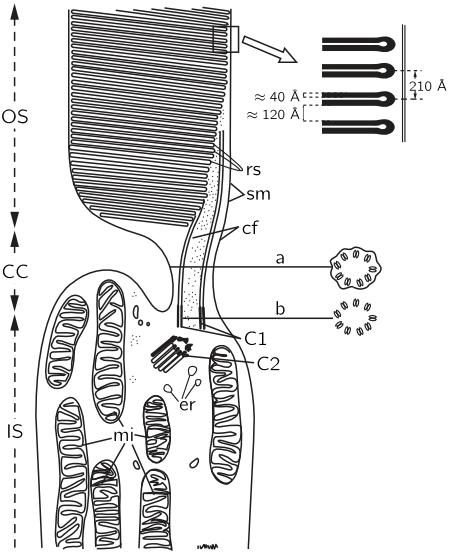
Bây giờ hãy xem xét chi tiết hơn điều gì xảy ra trong các tế bào que. Hình 36–5 cho thấy một ảnh hiển vi điện tử của phần giữa của một tế bào que (tế bào que tiếp tục đi lên ra khỏi trường). Có lớp này nối lớp kia các cấu trúc phẳng, được cho phóng đại ở phía phải, chứa chất rhodopsin (sắc tố tím thị giác), thuốc nhuộm, hay sắc tố, tạo ra các hiệu ứng của thị giác trong các tế bào que. Rhodopsin, là sắc tố, là một protein lớn chứa một nhóm đặc biệt gọi là retinene, có thể được lấy ra khỏi protein, và chắc chắn là nguyên nhân chính của sự hấp thụ ánh sáng. Chúng ta không hiểu lý do của các mặt phẳng, nhưng rất có thể có một lý do nào đó để giữ mọi phân tử rhodopsin song song. Hóa học của sự việc đã được làm rõ đến một mức lớn, nhưng có thể có một ít vật lý trong đó. Có thể mọi phân tử được sắp xếp thành một loại hàng nào đó sao cho khi một phân tử bị kích thích, một electron được tạo ra, chẳng hạn, có thể chạy hết đường xuống một chỗ nào đó ở cuối để đưa tín hiệu ra, hay điều gì đó tương tự. Chủ đề này rất quan trọng, và chưa được làm rõ. Nó là một lĩnh vực trong đó cả hóa sinh và vật lý chất rắn, hay điều gì đó tương tự, cuối cùng sẽ được dùng.
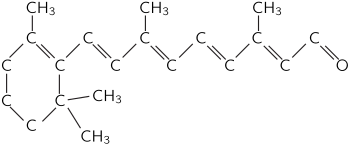
Loại cấu trúc này, với các lớp, xuất hiện trong các hoàn cảnh khác nơi ánh sáng quan trọng, chẳng hạn trong lục lạp ở thực vật, nơi ánh sáng gây ra quang hợp. Nếu chúng ta phóng đại chúng, chúng ta tìm thấy cùng một thứ với gần như cùng loại lớp, nhưng ở đó chúng ta có chlorophyll (diệp lục), dĩ nhiên, thay cho retinene. Dạng hóa học của retinene được cho trong Hình 36–6. Nó có một dãy các liên kết đôi luân phiên dọc theo mạch bên, là đặc trưng của gần như mọi chất hữu cơ hấp thụ mạnh, như chlorophyll, máu, và cứ thế. Chất này con người không thể tự chế tạo trong các tế bào của mình — chúng ta phải ăn nó. Vậy chúng ta ăn nó dưới dạng một chất đặc biệt, đúng như retinene ngoại trừ việc có một hydro gắn ở đầu phải; nó được gọi là vitamin A, và nếu chúng ta không ăn đủ nó, chúng ta không có nguồn cung retinene, và mắt trở thành thứ chúng ta gọi là quáng gà (night blind), bởi vì khi đó không có đủ sắc tố trong rhodopsin để nhìn bằng tế bào que vào ban đêm.
Lý do vì sao một dãy liên kết đôi như vậy hấp thụ ánh sáng rất mạnh cũng đã được biết. Chúng ta có thể chỉ đưa ra một gợi ý: Dãy liên kết đôi luân phiên được gọi là một liên kết đôi liên hợp; một liên kết đôi có nghĩa là có một electron thêm ở đó, và electron thêm này dễ dàng được dịch chuyển sang phải hay trái. Khi ánh sáng đập vào phân tử này, electron của mỗi liên kết đôi được dịch chuyển qua một bước. Mọi electron trong toàn bộ mạch đều dịch chuyển, như một dãy domino ngã xuống, và mặc dù mỗi electron chỉ di chuyển một khoảng nhỏ (chúng ta sẽ kỳ vọng rằng, trong một nguyên tử đơn lẻ, chúng ta chỉ có thể di chuyển electron một khoảng nhỏ), hiệu ứng ròng cũng giống như thể electron ở cuối đã được di chuyển qua tới đầu kia! Nó giống như thể một electron đã đi toàn bộ khoảng cách qua lại, và vậy, theo cách này, chúng ta thu được một sự hấp thụ mạnh hơn nhiều dưới ảnh hưởng của điện trường, so với nếu chúng ta chỉ có thể di chuyển electron một khoảng gắn liền với một nguyên tử. Vậy, vì dễ dàng di chuyển các electron qua lại, retinene hấp thụ ánh sáng rất mạnh; đó là bộ máy của đầu vật lý–hóa học của nó.
36–4 Mắt kép (côn trùng)
Bây giờ hãy quay trở lại sinh học. Mắt người không phải là loại mắt duy nhất. Ở động vật có xương sống, hầu như mọi mắt về cơ bản đều giống mắt người. Tuy nhiên, ở các động vật bậc thấp hơn có nhiều loại mắt khác: đốm mắt, các chén mắt khác nhau, và các thứ kém nhạy khác, mà chúng ta không có thời gian thảo luận. Nhưng có một mắt phát triển cao khác trong số động vật không xương sống, mắt kép của côn trùng. (Hầu hết côn trùng có các mắt kép lớn cũng có nhiều mắt đơn giản hơn bổ sung khác nhau.) Một con ong là một côn trùng mà thị giác của nó đã được nghiên cứu rất cẩn thận. Việc nghiên cứu các tính chất của thị giác của ong là dễ dàng bởi vì chúng bị thu hút bởi mật ong, và chúng ta có thể thực hiện các thí nghiệm trong đó chúng ta xác định mật ong bằng cách đặt nó lên giấy xanh lam hay giấy đỏ, và xem chúng đến tờ nào. Bằng phương pháp này một số điều rất thú vị đã được khám phá về thị giác của ong.
Trước hết, khi cố đo xem ong có thể nhìn thấy sự khác biệt màu sắc giữa hai mảnh giấy “trắng” sắc nét đến mức nào, một số nhà nghiên cứu thấy chúng không tốt lắm, và những người khác thấy chúng tốt một cách kỳ diệu. Ngay cả khi hai mảnh giấy trắng gần như đúng như nhau, ong vẫn có thể cho biết sự khác biệt. Các nhà thí nghiệm dùng kẽm trắng cho một mảnh giấy và chì trắng cho mảnh kia, và mặc dù những thứ này trông đúng như nhau đối với chúng ta, ong có thể dễ dàng phân biệt chúng, bởi vì chúng phản xạ một lượng khác nhau trong vùng tử ngoại. Theo cách này người ta đã khám phá ra rằng mắt của ong nhạy trên một khoảng quang phổ rộng hơn mắt của chúng ta. Mắt của chúng ta hoạt động từ 7000 angstrom tới 4000 angstrom, từ đỏ tới tím, nhưng mắt của ong có thể nhìn xuống tới 3000 angstrom vào vùng tử ngoại! Điều này tạo ra một số hiệu ứng thú vị khác nhau. Trước hết, ong có thể phân biệt giữa nhiều hoa mà đối với chúng ta trông giống nhau. Dĩ nhiên, chúng ta phải nhận thức rằng màu sắc của hoa không được thiết kế cho mắt của chúng ta, mà cho ong; chúng là các tín hiệu để thu hút ong tới một hoa cụ thể. Tất cả chúng ta đều biết rằng có nhiều hoa “trắng”. Rõ ràng màu trắng không thú vị lắm đối với ong, bởi vì hóa ra mọi hoa trắng đều có các tỉ lệ phản xạ khác nhau trong vùng tử ngoại; chúng không phản xạ một trăm phần trăm vùng tử ngoại như một màu trắng thật sẽ làm. Không phải mọi ánh sáng đều quay trở lại, vùng tử ngoại bị thiếu, và đó là một màu, đúng như, đối với chúng ta, nếu màu lam bị thiếu, nó thành màu vàng. Vậy, mọi hoa đều có màu đối với ong. Tuy nhiên, chúng ta cũng biết rằng màu đỏ không thể được ong nhìn thấy. Vậy chúng ta có thể kỳ vọng rằng mọi hoa đỏ hẳn trông đen đối với ong. Không phải vậy! Một nghiên cứu cẩn thận về các hoa đỏ cho thấy, trước hết, ngay cả bằng mắt của chính chúng ta chúng ta có thể thấy rằng đại đa số hoa đỏ có một sắc hơi lam bởi vì chúng chủ yếu phản xạ một lượng bổ sung trong vùng lam, là phần ong nhìn thấy. Hơn nữa, các thí nghiệm cũng cho thấy hoa biến thiên trong sự phản xạ vùng tử ngoại của chúng trên các phần khác nhau của cánh hoa, và cứ thế. Vậy nếu chúng ta có thể nhìn thấy hoa như ong nhìn thấy chúng, chúng sẽ còn đẹp và đa dạng hơn nữa!
Tuy nhiên, người ta đã chỉ ra rằng có một ít hoa đỏ không phản xạ trong vùng lam hay trong vùng tử ngoại, và do đó, sẽ xuất hiện đen đối với ong! Điều này gây khá nhiều lo lắng cho những người lo về vấn đề này, bởi vì màu đen không có vẻ là một màu thú vị, vì khó phân biệt nó với một cái bóng cũ bẩn. Thật ra hóa ra những hoa này không được ong ghé thăm, đây là các hoa được chim ruồi ghé thăm, và chim ruồi có thể nhìn thấy màu đỏ!
Một khía cạnh thú vị khác của thị giác của ong là ong dường như có thể cho biết hướng của mặt trời bằng cách nhìn vào một mảng trời xanh, mà không nhìn thấy chính mặt trời. Chúng ta không thể dễ dàng làm điều này. Nếu chúng ta nhìn ra cửa sổ vào bầu trời và thấy nó màu xanh lam, mặt trời ở hướng nào? Ong có thể cho biết, bởi vì ong khá nhạy với sự phân cực của ánh sáng, và ánh sáng tán xạ của bầu trời bị phân cực.2 Vẫn còn một ít tranh luận về cách độ nhạy này hoạt động. Liệu đó là vì sự phản xạ của ánh sáng khác nhau trong các hoàn cảnh khác nhau, hay mắt của ong nhạy trực tiếp, vẫn chưa được biết.3
Người ta cũng nói rằng ong có thể nhận thấy sự nhấp nháy lên tới 200 dao động mỗi giây, trong khi chúng ta chỉ nhìn thấy nó lên tới 20. Các chuyển động của ong trong tổ rất nhanh; chân di chuyển và cánh rung, nhưng rất khó cho chúng ta nhìn thấy các chuyển động này bằng mắt. Tuy nhiên, nếu chúng ta có thể nhìn nhanh hơn chúng ta sẽ có thể nhìn thấy chuyển động. Có lẽ việc mắt của nó có đáp ứng nhanh như vậy là rất quan trọng đối với ong.
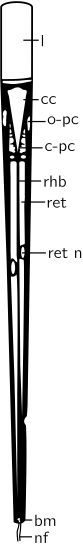
Bây giờ hãy thảo luận độ sắc nét thị giác chúng ta có thể kỳ vọng từ ong. Mắt của một con ong là một mắt kép, và nó được làm từ một số lượng lớn các tế bào đặc biệt gọi là ommatidia (mắt đơn), được sắp xếp hình nón trên bề mặt của một mặt cầu (gần đúng) ở phía ngoài đầu của ong. Hình 36–7 cho thấy một hình ảnh của một ommatidium như vậy. Ở phía trên có một vùng trong suốt, một loại “thấu kính”, nhưng thật ra nó giống một bộ lọc hay ống dẫn sáng hơn để làm cho ánh sáng đi xuống dọc theo sợi hẹp, là nơi sự hấp thụ có lẽ xảy ra. Ra khỏi đầu kia của nó là sợi thần kinh. Sợi trung tâm được bao quanh ở các phía của nó bởi sáu tế bào mà, thật ra, đã tiết ra sợi. Mô tả như vậy là đủ cho các mục đích của chúng ta; điểm chính là nó là một thứ hình nón và nhiều cái có thể khít cạnh nhau trên khắp bề mặt của mắt ong.
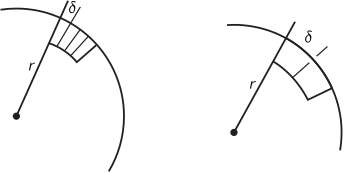
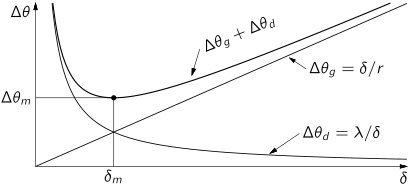
Bây giờ hãy thảo luận độ phân giải của mắt ong. Nếu chúng ta vẽ các đường (Hình 36–8) để biểu diễn các ommatidia trên bề mặt, mà chúng ta giả sử là một mặt cầu bán kính r, chúng ta thật ra có thể tính xem mỗi ommatidium rộng bao nhiêu bằng cách dùng bộ não của mình, và giả sử rằng tiến hóa cũng khéo léo như chúng ta! Nếu chúng ta có một ommatidium rất lớn chúng ta không có nhiều độ phân giải. Tức là, một tế bào nhận một mẩu thông tin từ một hướng, và tế bào kề nhận một mẩu thông tin từ một hướng khác, và cứ thế, và ong không thể nhìn các vật ở giữa tốt lắm. Vậy sự không chắc chắn của độ sắc nét thị giác trong mắt chắc chắn sẽ tương ứng với một góc, góc của đầu của ommatidium so với tâm cong của mắt. (Các tế bào mắt, dĩ nhiên, chỉ tồn tại ở bề mặt của mặt cầu; bên trong đó là đầu của ong.) Góc này, từ một ommatidium tới cái tiếp theo, dĩ nhiên, là đường kính của các ommatidia chia cho bán kính của bề mặt mắt:
Δθg = δ/r. (36.1)
Vậy, chúng ta có thể nói, “Chúng ta làm δ càng mịn, độ sắc nét thị giác càng nhiều. Vậy tại sao ong không chỉ dùng các ommatidia rất, rất mịn?” Đáp án: Chúng ta biết đủ vật lý để nhận ra rằng nếu chúng ta đang cố đưa ánh sáng xuống vào một khe hẹp, chúng ta không thể nhìn chính xác theo một hướng cho trước bởi vì hiệu ứng nhiễu xạ. Ánh sáng đến từ vài hướng có thể đi vào và, do nhiễu xạ, chúng ta sẽ thu được ánh sáng đi vào ở góc Δθd sao cho
Δθd = λ/δ. (36.2)
Bây giờ chúng ta thấy rằng nếu chúng ta làm δ quá nhỏ, thì mỗi ommatidium không nhìn chỉ theo một hướng, bởi vì nhiễu xạ! Nếu chúng ta làm chúng quá lớn, mỗi cái nhìn theo một hướng xác định, nhưng không có đủ chúng để thu được một cái nhìn tốt về cảnh. Vậy chúng ta điều chỉnh khoảng cách δ để làm cực tiểu hiệu ứng tổng của hai hiệu ứng này. Nếu chúng ta cộng hai thứ lại với nhau, và tìm chỗ tổng có cực tiểu (Hình 36–9), chúng ta tìm thấy rằng
d/dδ (Δθg + Δθd) = 0 = 1/r − λ/δ2, (36.3)
điều này cho chúng ta một khoảng cách
δ = √(λr). (36.4)
Nếu chúng ta đoán rằng r khoảng 3 milimét, lấy ánh sáng ong nhìn thấy là 4000 angstrom, và đặt hai thứ lại với nhau và lấy căn bậc hai, chúng ta tìm thấy
δ = (3×10−3×4×10−7)1/2 m = 3,5×10⁻⁵ m = 35 μm. (36.5)
Sách nói đường kính là 30 μm, vậy đó là sự phù hợp khá tốt! Vậy, rõ ràng, nó thật sự hoạt động, và chúng ta có thể hiểu điều gì quyết định kích thước của mắt ong! Cũng dễ dàng đặt số trên trở lại và tìm ra mắt ong thật sự tốt đến mức nào trong độ phân giải góc; nó rất kém so với mắt của chính chúng ta. Chúng ta có thể nhìn thấy các vật nhỏ hơn ba mươi lần về kích thước biểu kiến so với ong; ong có một ảnh khá mờ, mất nét so với những gì chúng ta có thể nhìn thấy. Dù vậy nó vẫn ổn, và nó là tốt nhất chúng có thể làm. Chúng ta có thể hỏi tại sao ong không phát triển một mắt tốt như của chúng ta, với một thấu kính và cứ thế. Có vài lý do thú vị. Trước hết, ong quá nhỏ; nếu nó có một mắt như của chúng ta, nhưng ở tỉ lệ của nó, lỗ mở sẽ khoảng 30 μm kích thước và nhiễu xạ sẽ quan trọng đến mức nó dù sao cũng sẽ không thể nhìn tốt lắm. Mắt không tốt nếu nó quá nhỏ. Thứ hai, nếu nó lớn bằng đầu của ong, thì mắt sẽ chiếm toàn bộ đầu của ong. Vẻ đẹp của mắt kép là nó không chiếm không gian, nó chỉ là một lớp rất mỏng trên bề mặt của ong. Vậy khi chúng ta lập luận rằng chúng đáng lẽ nên làm theo cách của chúng ta, chúng ta phải nhớ rằng chúng có các bài toán riêng của chúng!
36–5 Các mắt khác
Ngoài ong, nhiều động vật khác có thể nhìn thấy màu. Cá, bướm, chim, và bò sát có thể nhìn thấy màu, nhưng người ta tin rằng hầu hết động vật có vú thì không thể. Linh trưởng có thể nhìn thấy màu. Chim chắc chắn nhìn thấy màu, và điều đó giải thích màu sắc của chim. Sẽ không có ý nghĩa gì trong việc có những con đực có màu rực rỡ như vậy nếu con cái không thể nhận thấy nó! Tức là, sự tiến hóa của “bất cứ thứ gì” về giới tính mà chim có là kết quả của việc con cái có khả năng nhìn thấy màu. Vậy lần tới khi chúng ta nhìn vào một con công và nghĩ đó là một màn trình diễn màu sắc rực rỡ tuyệt vời biết bao, và mọi màu sắc tinh tế đến thế nào, và cần một cảm giác thẩm mỹ tuyệt vời đến thế nào để đánh giá tất cả điều đó, chúng ta không nên khen con công trống, mà nên khen thị lực và cảm giác thẩm mỹ của con công mái, bởi vì đó là thứ đã tạo ra cảnh đẹp!
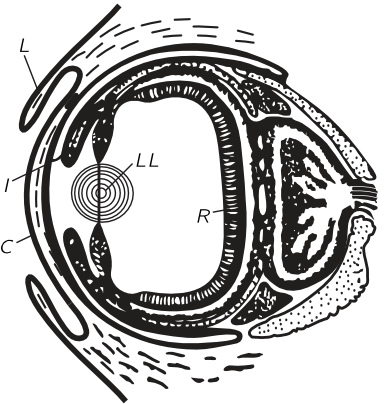
Mọi động vật không xương sống đều có mắt phát triển kém hoặc mắt kép, nhưng mọi động vật có xương sống đều có mắt rất giống mắt của chúng ta, với một ngoại lệ. Nếu chúng ta xét dạng động vật cao nhất, chúng ta thường nói, “Chúng ta đây!”, nhưng nếu chúng ta có một quan điểm ít thành kiến hơn và giới hạn mình ở động vật không xương sống, sao cho chúng ta không thể bao gồm chính mình, và hỏi động vật không xương sống cao nhất là gì, hầu hết các nhà động vật học đồng ý rằng bạch tuộc là động vật cao nhất! Rất thú vị là, ngoài sự phát triển của bộ não và các phản ứng của nó và cứ thế, khá tốt đối với một động vật không xương sống, nó cũng đã phát triển, một cách độc lập, một mắt khác. Nó không phải là một mắt kép hay một đốm mắt — nó có một giác mạc, nó có mí mắt, nó có một mống mắt, nó có một thấu kính, nó có hai vùng nước, nó có một võng mạc ở phía sau. Về cơ bản nó giống như mắt của động vật có xương sống! Nó là một ví dụ đáng chú ý về một sự trùng hợp trong tiến hóa nơi tự nhiên đã hai lần khám phá ra cùng một giải pháp cho một bài toán, với một cải tiến nhỏ. Ở bạch tuộc hóa ra cũng vậy, thật đáng kinh ngạc, võng mạc là một mảnh của bộ não đã đi ra theo cùng cách trong sự phát triển phôi của nó như đúng đối với động vật có xương sống, nhưng điều thú vị khác biệt là các tế bào nhạy cảm với ánh sáng ở phía trong, và các tế bào thực hiện tính toán ở phía sau chúng, thay vì “lộn trong ra ngoài”, như trong mắt của chúng ta. Vậy chúng ta thấy, ít nhất, rằng không có lý do tốt nào cho việc nó bị lộn trong ra ngoài. Lần khác tự nhiên thử nó, bà ta đã làm nó thẳng ra! (Xem Hình 36–10.) Các mắt lớn nhất trên thế giới là mắt của mực khổng lồ; chúng đã được tìm thấy lên tới 15 inch đường kính!
36–6 Thần kinh học của thị giác
Một trong các điểm chính của chủ đề của chúng ta là sự kết nối liên thông của thông tin từ phần này của mắt tới phần kia. Hãy xét mắt kép của sam biển (horseshoe crab), mà trên đó khá nhiều thí nghiệm đã được thực hiện. Trước hết, chúng ta phải đánh giá đúng loại thông tin nào có thể đi dọc theo các dây thần kinh. Một dây thần kinh mang một loại nhiễu loạn có một hiệu ứng điện dễ phát hiện, một loại nhiễu loạn giống sóng chạy xuống dây thần kinh và tạo ra một hiệu ứng ở đầu kia: một mảnh dài của tế bào thần kinh, gọi là sợi trục, mang thông tin dọc theo, và một loại xung nào đó, gọi là một “gai” (spike), đi dọc theo nếu nó bị kích thích ở một đầu. Khi một gai đi xuống dây thần kinh, một gai khác không thể lập tức đi theo. Mọi gai đều có cùng kích thước, vậy không phải chúng ta thu được các gai cao hơn khi vật bị kích thích mạnh hơn, mà chúng ta thu được nhiều gai hơn mỗi giây. Kích thước của gai được quyết định bởi sợi. Điều quan trọng là đánh giá đúng điều này để xem điều gì xảy ra tiếp theo.
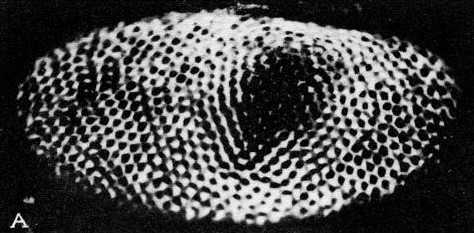
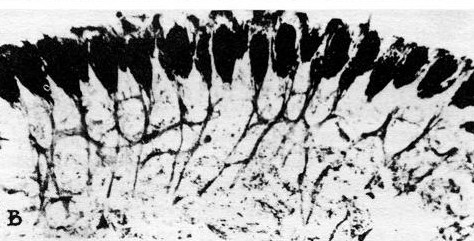
Hình 36–11(a) cho thấy mắt kép của sam biển; nó không phải là một con mắt lắm, nó chỉ có khoảng một nghìn ommatidia. Hình 36–11(b) là một mặt cắt ngang qua hệ thống; người ta có thể nhìn thấy các ommatidia, với các sợi thần kinh chạy ra khỏi chúng và đi vào bộ não. Nhưng lưu ý rằng ngay cả ở một con sam biển cũng có các kết nối liên thông nhỏ. Chúng ít tinh vi hơn nhiều so với trong mắt người, và nó cho chúng ta một cơ hội để nghiên cứu một ví dụ đơn giản hơn.
Bây giờ hãy nhìn vào các thí nghiệm đã được thực hiện bằng cách đặt các điện cực mịn vào dây thần kinh thị giác của sam biển, và chiếu sáng lên chỉ một trong các ommatidia, điều dễ làm bằng các thấu kính. Nếu chúng ta bật một ánh sáng tại một thời điểm nào đó t0, và đo các xung điện đi ra, chúng ta thấy rằng có một độ trễ nhỏ và rồi một dãy phóng điện nhanh dần dần chậm xuống tới một tốc độ đồng đều, như được cho trong Hình 36–12(a). Khi ánh sáng tắt, sự phóng điện dừng lại. Bây giờ rất thú vị là nếu, trong khi bộ khuếch đại của chúng ta được nối với cùng sợi thần kinh này, chúng ta chiếu sáng lên một ommatidium khác thì không có gì xảy ra; không có tín hiệu.
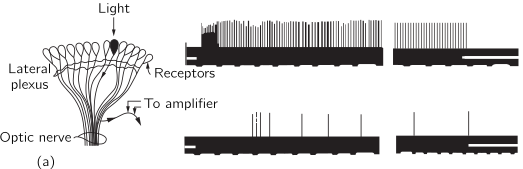
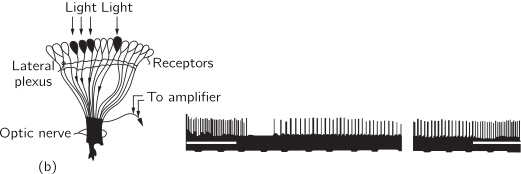
Bây giờ chúng ta làm một thí nghiệm khác: chúng ta chiếu ánh sáng lên ommatidium gốc và thu được cùng đáp ứng, nhưng nếu bây giờ chúng ta bật ánh sáng lên một ommatidium khác gần đó nữa, các xung bị ngắt quãng trong chốc lát và rồi chạy ở một tốc độ thấp hơn nhiều (Hình 36–12b). Tốc độ của một cái bị ức chế bởi các xung đang đi ra khỏi cái kia! Nói cách khác, mỗi sợi thần kinh mang thông tin từ một ommatidium, nhưng lượng nó mang bị ức chế bởi các tín hiệu từ các cái khác. Vậy, chẳng hạn, nếu toàn bộ mắt được chiếu sáng ít nhiều đồng đều, thông tin đến từ bất kỳ một ommatidium nào sẽ tương đối yếu, bởi vì nó bị ức chế bởi rất nhiều cái. Thật vậy sự ức chế là cộng tính — nếu chúng ta chiếu sáng lên vài ommatidia gần đó sự ức chế rất lớn. Sự ức chế lớn hơn khi các ommatidia ở gần hơn, và nếu các ommatidia đủ xa nhau, sự ức chế thực tế bằng không. Vậy nó là cộng tính và phụ thuộc vào khoảng cách; ở đây là một ví dụ đầu tiên về thông tin từ các phần khác nhau của mắt được kết hợp trong chính mắt. Chúng ta có thể thấy, có lẽ, nếu chúng ta suy nghĩ về nó một lúc, rằng đây là một thiết bị để tăng cường độ tương phản ở các cạnh của vật, bởi vì nếu một phần của cảnh sáng và một phần đen, thì các ommatidia trong vùng được chiếu sáng cho các xung bị ức chế bởi mọi ánh sáng khác trong vùng lân cận, vậy nó tương đối yếu. Mặt khác, một ommatidium ở biên được cho một xung “trắng” cũng bị ức chế bởi các cái khác trong vùng lân cận, nhưng không có nhiều như vậy, vì một số là đen; tín hiệu ròng do đó mạnh hơn. Kết quả sẽ là một đường cong, một cái gì đó như Hình 36–13. Sam biển sẽ nhìn thấy một sự tăng cường của đường viền.
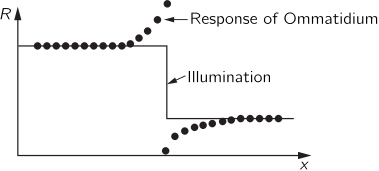
Sự kiện rằng có một sự tăng cường các đường viền đã được biết từ lâu; thật vậy nó là một điều đáng chú ý đã được các nhà tâm lý học bình luận nhiều lần. Để vẽ một vật, chúng ta chỉ phải vẽ đường viền của nó. Chúng ta quen nhìn các hình ảnh chỉ có đường viền biết bao! Đường viền là gì? Đường viền chỉ là sự khác biệt ở cạnh giữa sáng và tối hay một màu này và một màu khác. Nó không phải là một thứ xác định. Không phải, tin hay không, mọi vật đều có một đường xung quanh nó! Không có đường như vậy. Chỉ trong cấu tạo tâm lý của chính chúng ta mới có một đường; chúng ta đang bắt đầu hiểu các lý do vì sao “đường” là đủ một manh mối để thu được toàn bộ sự việc. Có lẽ mắt của chính chúng ta hoạt động theo một cách tương tự — phức tạp hơn nhiều, nhưng tương tự.
Cuối cùng, chúng ta sẽ mô tả vắn tắt công trình tinh vi hơn, công trình đẹp, tiên tiến đã được thực hiện trên ếch. Thực hiện một thí nghiệm tương ứng trên một con ếch, bằng cách đặt các đầu dò giống kim rất mịn, được chế tạo rất đẹp vào dây thần kinh thị giác của một con ếch, người ta có thể thu được các tín hiệu đang đi dọc theo một sợi trục cụ thể và, đúng như trong trường hợp sam biển, chúng ta thấy rằng thông tin không phụ thuộc vào chỉ một điểm trong mắt, mà là một tổng thông tin trên vài điểm.
| Loại | Tốc độ | Trường góc |
|---|---|---|
| 1. Phát hiện cạnh bền vững (không xóa được) | 0,2–0,5 m/giây | 1° |
| 2. Phát hiện cạnh lồi (xóa được) | 0,5 m/giây | 2°–3° |
| 3. Phát hiện tương phản thay đổi | 1–2 m/giây | 7°–10° |
| 4. Phát hiện mờ dần | Lên tới 1/2 m/giây | Lên tới 15° |
| 5. Phát hiện bóng tối | ? | Rất lớn |
Bức tranh mới nhất về hoạt động của mắt ếch là như sau. Người ta có thể tìm thấy bốn loại sợi thần kinh thị giác khác nhau, theo nghĩa có bốn loại đáp ứng khác nhau. Các thí nghiệm này không được thực hiện bằng cách chiếu các xung ánh sáng bật–tắt, bởi vì đó không phải là thứ một con ếch nhìn thấy. Một con ếch chỉ ngồi đó và mắt nó không bao giờ di chuyển, trừ khi tấm lá súng đang phập phồng qua lại, và trong trường hợp đó mắt nó lắc đúng mức sao cho ảnh đứng yên. Nó không quay mắt. Nếu bất cứ thứ gì di chuyển trong trường nhìn của nó, như một con bọ nhỏ (nó phải có khả năng nhìn thấy một thứ gì đó nhỏ đang di chuyển trong nền cố định), hóa ra có bốn loại sợi khác nhau phóng điện, mà các tính chất của chúng được tóm tắt trong Bảng 36–1. Phát hiện cạnh bền vững, không xóa được, có nghĩa là nếu chúng ta mang một vật có một cạnh vào trường nhìn của ếch, thì có rất nhiều xung trong sợi cụ thể này trong khi vật đang di chuyển, nhưng chúng giảm xuống tới một xung bền vững tiếp tục chừng nào cạnh còn ở đó, ngay cả khi nó đứng yên. Nếu chúng ta tắt ánh sáng, các xung dừng lại. Nếu chúng ta bật nó lại trong khi cạnh vẫn trong tầm nhìn, chúng bắt đầu lại. Chúng không xóa được. Một loại sợi khác rất tương tự, ngoại trừ việc nếu cạnh thẳng nó không hoạt động. Nó phải là một cạnh lồi với bóng tối phía sau nó! Hệ thống các kết nối liên thông trong võng mạc của mắt ếch phải phức tạp đến mức nào để nó hiểu rằng một bề mặt lồi đã di chuyển vào! Hơn nữa, mặc dù sợi này có bền vững phần nào, nó không bền vững lâu như sợi kia, và nếu chúng ta tắt ánh sáng và bật nó lại nó không tích lũy lại. Nó phụ thuộc vào việc bề mặt lồi di chuyển vào. Mắt nhìn thấy nó di chuyển vào và nhớ rằng nó ở đó, nhưng nếu chúng ta chỉ tắt ánh sáng trong một lúc, nó đơn giản quên nó và không còn nhìn thấy nó nữa.
Một ví dụ khác là phát hiện thay đổi–tương phản. Nếu có một cạnh di chuyển vào hay ra thì có các xung, nhưng nếu vật đứng yên thì không có xung nào cả.
Rồi có một bộ phát hiện mờ dần. Nếu cường độ ánh sáng đang đi xuống nó tạo ra các xung, nhưng nếu nó ở yên xuống hay ở yên lên, xung dừng lại; nó chỉ hoạt động trong khi ánh sáng đang mờ dần.
Rồi, cuối cùng, có một ít sợi là bộ phát hiện bóng tối — một điều kỳ diệu nhất — chúng bắn mọi lúc! Nếu chúng ta tăng ánh sáng, chúng bắn ít nhanh hơn, nhưng mọi lúc. Nếu chúng ta giảm ánh sáng, chúng bắn nhanh hơn, mọi lúc. Trong bóng tối chúng bắn như điên, liên tục nói, “Tối! Tối! Tối!”
Bây giờ các đáp ứng này dường như khá phức tạp để phân loại, và chúng ta có thể tự hỏi liệu có lẽ các thí nghiệm đang bị diễn giải sai không. Nhưng rất thú vị là các lớp này cũng được tách ra rất rõ ràng trong giải phẫu của ếch! Bằng các phép đo khác, sau khi các đáp ứng này đã được phân loại (sau đó, đó là điều quan trọng về nó), người ta đã khám phá ra rằng tốc độ của các tín hiệu trên các sợi khác nhau không như nhau, vậy ở đây là một cách độc lập khác để kiểm tra chúng ta đã tìm thấy loại sợi nào!
Một câu hỏi thú vị khác là từ một vùng lớn đến mức nào một sợi cụ thể đang thực hiện các tính toán của nó? Đáp án khác nhau đối với các lớp khác nhau.
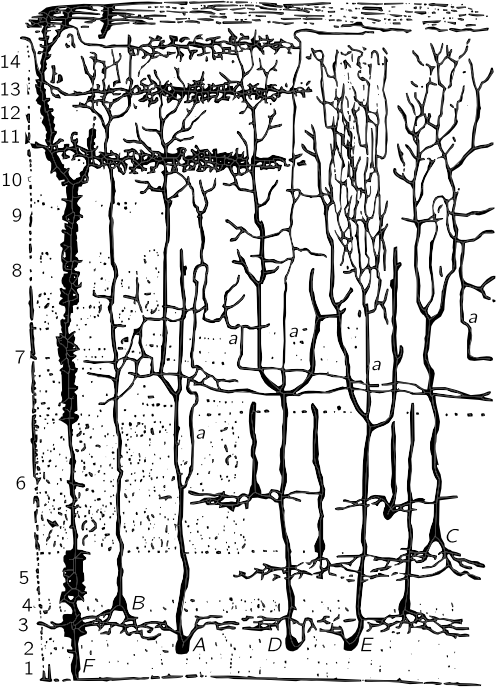
Hình 36–14 cho thấy bề mặt của thứ gọi là tectum của một con ếch, nơi các dây thần kinh đi vào bộ não từ dây thần kinh thị giác. Mọi sợi thần kinh đi vào từ dây thần kinh thị giác tạo các kết nối trong các lớp khác nhau của tectum. Cấu trúc lớp này tương tự như võng mạc; đó một phần là lý do chúng ta biết rằng bộ não và võng mạc rất giống nhau. Bây giờ, bằng cách lấy một điện cực và di chuyển nó xuống liên tiếp qua các lớp, chúng ta có thể tìm ra loại dây thần kinh thị giác nào kết thúc ở đâu, và kết quả đẹp và tuyệt vời là các loại sợi khác nhau kết thúc trong các lớp khác nhau! Các sợi đầu tiên kết thúc trong loại số 1, sợi thứ hai trong số 2, các sợi ba và năm kết thúc ở cùng một chỗ, và sâu nhất trong tất cả là số bốn. (Thật là một sự trùng hợp, chúng đã có các số gần như đúng thứ tự! Không, đó là lý do chúng đánh số chúng theo cách đó, bài báo đầu tiên có các số theo một thứ tự khác!)
Chúng ta có thể tóm tắt vắn tắt những gì chúng ta vừa học theo cách này: Có ba sắc tố, có lẽ vậy. Có thể có nhiều loại tế bào thụ thể khác nhau chứa ba sắc tố theo các tỉ lệ khác nhau, nhưng có nhiều kết nối chéo có thể cho phép cộng và trừ qua cộng và tăng cường trong hệ thần kinh. Vậy trước khi chúng ta thật sự hiểu thị giác màu, chúng ta sẽ phải hiểu cảm giác cuối cùng. Chủ đề này vẫn là một chủ đề mở, nhưng các nghiên cứu này với vi điện cực và cứ thế có lẽ cuối cùng sẽ cho chúng ta nhiều thông tin hơn về cách chúng ta nhìn thấy màu.
Thư mục tham khảo
Committee on Colorimetry, Optical Society of America, The Science of Color, Thomas Y. Crowell Company, New York, 1953.
“Mechanisms of Vision,” 2nd Supplement to Journal of General Physiology, Vol. 43, No. 6, Part 2, July 1960, Rockefeller Institute Press.
Các bài cụ thể:
DeRobertis, E., “Some Observations on the Ultrastructure and Morphogenesis of Photoreceptors,” pp. 1–15.
Hurvich, L. M. and D. Jameson, “Perceived Color, Induction Effects, and Opponent-Response Mechanisms,” pp. 63–80.
Rosenblith, W. A., ed., Sensory Communication, Massachusetts Institute of Technology Press, Cambridge, Mass., 1961.
“Sight, Sense of,” Encyclopaedia Britannica, Vol. 20, 1957, pp. 628–635.
Ghi chú
1. Các màu phụ thuộc vào tốc độ quay, vào độ sáng của chiếu sáng, và ở một mức nào đó vào ai nhìn vào chúng và người đó nhìn chằm chằm vào chúng chăm chú đến mức nào.
2. Mắt người cũng có một độ nhạy nhẹ với sự phân cực của ánh sáng, và người ta có thể học cách cho biết hướng của mặt trời! Hiện tượng liên quan ở đây được gọi là bàn chải Haidinger (Haidinger’s brush); nó là một mẫu hình giống đồng hồ cát, hơi vàng, mờ, được nhìn thấy ở trung tâm trường nhìn khi người ta nhìn vào một khoảng rộng, không có đặc điểm bằng kính phân cực. Nó cũng có thể được nhìn thấy trên bầu trời xanh mà không cần kính phân cực nếu người ta quay đầu qua lại quanh trục nhìn.
3. Bằng chứng thu được kể từ khi bài giảng này được trình bày chỉ ra rằng mắt nhạy trực tiếp.